
Las células de la línea hepática comprenden principalmente los hepatocitos, las células epiteliales de las vías biliares o colangiocitos y distintas poblaciones progenitoras capaces de originar células hepáticas maduras. El hígado también contiene células no parenquimatosas esenciales, como las células endoteliales sinusoidales, las células de Kupffer y las células estrelladas hepáticas o células de Ito.
Los hepatocitos desempeñan la mayor parte de las funciones metabólicas del órgano, mientras que los colangiocitos participan en la modificación y conducción de la bilis. Las células progenitoras hepáticas contribuyen al desarrollo, la reparación y la regeneración del tejido, y las células estrelladas regulan la matriz extracelular, almacenan vitamina A y participan tanto en la homeostasis como en la fibrosis hepática.
Qué se entiende por línea hepática
Las células de la línea hepática son las células que forman los principales linajes epiteliales y progenitores del hígado. Estas células pueden originarse durante el desarrollo embrionario a partir del endodermo hepático y, según su diferenciación, dar lugar a hepatocitos, colangiocitos y otras subpoblaciones celulares del tejido hepático.
Las células progenitoras del hígado humanas son células madre hepáticas humanas, células pluripotentes que dan origen a hepatocitos y células biliares y otras subpoblaciones de células progenitoras del hígado que pueden expandirse y diferenciarse en uno o más linajes de células del hígado incluyendo linajes de células hemopoyéticas, mesenquimatosas o hepáticas.
En los linajes hepáticos hay células progenitoras de hepatocitos comprometidas y células progenitoras biliares comprometidas. Estas poblaciones presentan un potencial más restringido que las células madre pluripotentes y pueden orientarse hacia destinos celulares específicos.
Principales tipos celulares del hígado
| Tipo celular | Localización o relación tisular | Funciones principales |
|---|---|---|
| Hepatocitos | Placas celulares del lobulillo y del ácino hepático | Metabolismo, síntesis de proteínas, detoxificación, formación y excreción de bilis |
| Colangiocitos | Conductos y vías biliares | Conducción y modificación de la bilis |
| Células endoteliales sinusoidales | Pared de los sinusoides | Intercambio entre la sangre y los hepatocitos |
| Células de Kupffer | Sinusoides hepáticos | Actividad macrofágica y respuesta inmunitaria |
| Células estrelladas hepáticas | Espacio perisinusoidal de Disse | Almacenamiento de vitamina A, regulación de la matriz extracelular y fibrogénesis |
| Células progenitoras hepáticas | Regiones progenitoras y nichos asociados a las vías biliares | Regeneración y diferenciación hacia hepatocitos y células biliares |
Hepatocitos: células parenquimatosas del hígado
Los hepatocitos, también llamados células parenquimatosas del hígado, desempeñan las funciones metabólicas de este órgano. El hígado es un órgano metabólicamente complejo.
- Formación y excreción de bilis durante el metabolismo de la bilirrubina.
- Regulación de la homeostasis de los carbohidratos.
- Síntesis de lípidos y secreción de lipoproteínas plasmáticas.
- Control del metabolismo del colesterol.
- Síntesis de urea, albúmina sérica, factores de coagulación, enzimas y varias otras proteínas.
- Metabolismo o detoxificación de fármacos y otras sustancias extrañas.
El hígado también funciona como un filtro y tiene un papel clave en la purificación y la eliminación de productos de desecho y toxinas, incluidos medicamentos y sustancias extrañas, del torrente sanguíneo. Además, participa en la regulación del metabolismo de carbohidratos, lípidos y proteínas, lo que abarca el almacenamiento de glucosa y glucógeno.
La desregulación de las funciones hepáticas normales puede manifestarse en resultados clínicos como trastornos hemorrágicos, mayor susceptibilidad a la infección, alteraciones en el azúcar en sangre y complicaciones de la hipertensión portal como encefalopatía hepática por la mayor acumulación de productos de desecho como amoníaco.
Organización de los hepatocitos en el lobulillo hepático
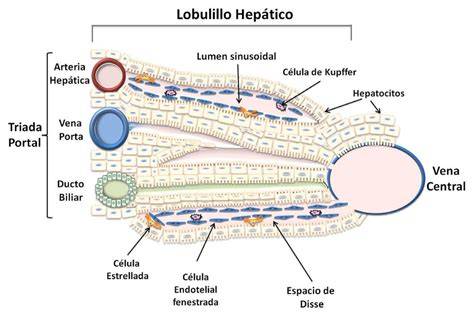
A nivel celular, los hepatocitos están organizados dentro de un lobulillo, que es un grupo de células de forma hexagonal con una vena hepática en el centro y tríadas portales alrededor de la periferia.
Las tríadas portales están compuestas por ramas terminales paralelas y adyacentes de conductos biliares, venas porta y arterias hepáticas. La sangre fluye desde la arteria hepática y la vena porta, situadas en las tríadas portales de la periferia, a través de los sinusoides entre los hepatocitos, hacia la vena central.
En consecuencia, los hepatocitos en el centro del lobulillo son más susceptibles a la isquemia porque el oxígeno y los nutrientes fueron extraídos por los hepatocitos mientras la sangre fluía a través de los sinusoides desde la periferia.
Canales más pequeños, llamados canalículos biliares, drenan la bilis secretada por los hepatocitos hacia los conductos biliares intrahepáticos en la periferia. Estos canalículos, formados por hepatocitos adyacentes, coalescen progresivamente en conductos, conductos biliares interlobulillares y conductos hepáticos más grandes hacia el conducto hepático.
El ácino hepático y la zonación celular
La unidad funcional y estructural principal del hígado maduro es el ácino, que en sección transversal se organiza como una rueda alrededor de dos lechos vasculares distintos: 3-7 conjuntos de tríadas portales, cada una con una vénula porta, una arteriola hepática y una vía biliar, para la periferia, y con la vena central en el cilindro.
Las células del hígado se organizan como placas celulares alineadas en ambos lados mediante endotelios fenestrados, que definen una serie de sinusoides que son contiguas con la vasculatura porta y central. La sangre fluye desde las vénulas porta y arteriolas hepáticas a través de las sinusoides hasta las vénulas hepáticas terminales y la vena central.
Basándose en este patrón microcirculatorio, el ácino se divide en tres zonas: zona 1, la región periportal; zona 2, la región media del ácino; y zona 3, la región pericentral.
| Zona | Ubicación | Características relacionadas |
|---|---|---|
| Zona 1 | Región periportal | Recibe sangre con mayor disponibilidad relativa de oxígeno y nutrientes |
| Zona 2 | Región media del ácino | Presenta características intermedias entre las regiones periportal y pericentral |
| Zona 3 | Región pericentral | Se encuentra cerca de la vena central y es más susceptible a la isquemia |
El potencial proliferativo, los criterios morfológicos, la ploidía y la mayoría de los genes específicos del hígado se correlacionan con la ubicación zonal. Los gradientes en la concentración de componentes sanguíneos, incluyendo oxígeno, a lo largo del ácino y siguiendo la dirección de flujo sanguíneo desde las tríadas portales hasta la vena central, son responsables de parte de esta zonación, por ejemplo la compartimentación recíproca de glicólisis y gluconeogénesis.
Sin embargo, la zonación periportal de la proteína de conexión comunicante conexina 26 y la zonación pericentral de glutamina sintetasa son insensibles a tales gradientes, son más representativas de la mayoría de los genes específicos de tejido y parecen determinarse por factores intrínsecos a las células o por variables diferentes del flujo sanguíneo en el microentorno.
Dominios funcionales de los hepatocitos
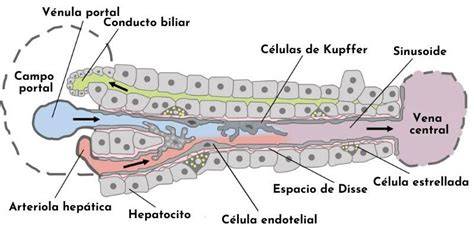
Un espacio estrecho, el espacio de Disse, separa los endotelios de los hepatocitos a lo largo de la sinusoide. Como resultado de esta organización, los hepatocitos tienen dos dominios basales, cada uno de los cuales está frente a una sinusoide, y un dominio apical que se define por la región de contacto entre hepatocitos adyacentes.
Los dominios basales están en contacto con la sangre y están implicados en la absorción y secreción de componentes plasmáticos, mientras que los dominios apicales forman canalículos biliares, especializados en la secreción de sales biliares y asociados a través de una red de interconexión con las vías biliares.
Esta polaridad permite que una misma célula realice intercambios con la sangre por sus superficies sinusoidales y, al mismo tiempo, produzca y secrete bilis hacia los canalículos formados entre hepatocitos contiguos.
Participación de los hepatocitos en el metabolismo de la bilirrubina
La degradación de los productos del hemo produce bilirrubina, que es un producto de desecho insoluble, y otros pigmentos biliares. La bilirrubina debe convertirse en hidrosoluble para excretarse.
Esta transformación sucede en cinco pasos: formación, transporte plasmático, captación hepática, conjugación y excreción biliar.
Formación de la bilirrubina
Todos los días se sintetizan entre 250 y 350 mg de bilirrubina no conjugada; entre el 70 y el 80% procede de la degradación de los eritrocitos en vías de degeneración y entre el 20 y el 30%, denominado bilirrubina de marcación temprana, se origina sobre todo a partir de otras proteínas hemo presentes en la médula ósea y el hígado.
La hemoglobina se degrada y se convierte en hierro y biliverdina, que a su vez se transforma en bilirrubina.
Transporte plasmático
La bilirrubina no conjugada, también llamada indirecta, no es hidrosoluble y, por lo tanto, se transporta en el plasma unida a la albúmina. No puede pasar a través de la membrana glomerular hacia la orina.
La unión a la albúmina se debilita en ciertas circunstancias, como la acidosis, y algunas sustancias, como los salicilatos y ciertos antibióticos, compiten por los sitios de unión.
Captación hepática y conjugación
El hígado absorbe la bilirrubina con facilidad, pero no la albúmina sérica unida a ella. La bilirrubina no conjugada presente en el hígado se conjuga para formar sobre todo diglucurónido de bilirrubina, también llamado bilirrubina conjugada o directa.
Esta reacción, catalizada por la enzima microsómica glucuroniltransferasa, convierte a la bilirrubina en hidrosoluble.
Excreción biliar
La bilirrubina conjugada, junto con otros constituyentes de la bilis, es secretada hacia pequeños canalículos biliares. El conducto hepático principal se une con el conducto cístico procedente de la vesícula biliar para formar el conducto colédoco, que desemboca en el duodeno a la altura de la ampolla de Vater.
En el intestino, las bacterias metabolizan la bilirrubina para formar urobilinógeno y un elevado porcentaje de esta sustancia continúa su metabolismo para constituir estercobilinas, que le confieren el color marrón a las heces.
En presencia de obstrucción biliar completa, las heces pierden su color normal y adquieren un color gris claro, conocido como heces acólicas. Parte del urobilinógeno se reabsorbe, se excreta del hepatocito e ingresa en la bilis mediante la circulación enterohepática.
Un pequeño porcentaje se excreta a través de la orina. Como la bilirrubina conjugada se excreta a través de la orina, pero no la bilirrubina no conjugada, sólo la hiperbilirrubinemia conjugada, por ejemplo secundaria a ictericia hepatocelular o colestásica, causa bilirrubinuria.
Colangiocitos y células epiteliales de las vías biliares
Además de los hepatocitos, las células epiteliales de las vías biliares, llamadas colangiocitos, forman parte de la línea epitelial hepática. Estas células se localizan en los conductos biliares y se relacionan con los canalículos formados por los hepatocitos.
El intersticio portal puede proporcionar el desencadenante para el desarrollo de las vías biliares y, cuando rodea las vénulas porta, las arteriolas hepáticas y las vías biliares, se forman las tríadas portales.
Los canalículos biliares se conectan progresivamente con los conductos biliares intrahepáticos. Esta continuidad estructural permite trasladar la bilis desde las superficies apicales de los hepatocitos hasta el árbol biliar.
Células endoteliales, células de Kupffer y células estrelladas
La región entre las vías porta y central contiene, además de hepatocitos, células epiteliales de las vías biliares y células endoteliales, otros tipos de célula, tales como las células de Ito y las células de Kupffer.
Las células de Kupffer son macrófagos hepáticos que participan en la vigilancia inmunitaria y en la eliminación de partículas y restos celulares. Las células endoteliales sinusoidales forman la pared de los sinusoides y permiten el intercambio entre la sangre y el compartimento hepatocitario.
Las células de Ito y las células de Kupffer desempeñan papeles prominentes en estados patogénicos del hígado, especialmente en inflamación y fibrosis, pero su contribución directa a las principales funciones homeostáticas del órgano normal es aparentemente pequeña.
Células estrelladas hepáticas o células de Ito
Fue Karl Kupffer quien en el año 1876 descubrió las células estrelladas del hígado cuando intentaba buscar fibras nerviosas en el hígado utilizando la técnica de cloruro de oro. Logró así identificar un grupo de células que presentaban prolongaciones que entraban en contacto con la pared sinusoidal y con los hepatocitos, a las que llamó «Sternzellen», o células estrelladas.
Hoy sabemos que las células estrelladas son células mesenquimales, perisinusoidales, ubicadas a lo largo de los sinusoides en el espacio perisinusoidal de Disse, aunque también pueden observarse entre las células parenquimatosas.
Clásicamente, el espacio de Disse se define como la zona limitada por los hepatocitos y la pared sinusoidal formada por las células endoteliales sinusoidales. Normalmente, este espacio contiene fibras nerviosas y algunos componentes de la matriz extracelular, como fibras colágenas de tipos I y III y componentes de la membrana basal que, por lo general, no llegan a formar una membrana basal verdadera.
Morfología y almacenamiento de vitamina A
En su estado quiescente, las células estrelladas hepáticas constituyen el 5-8% del número total de células hepáticas considerando las células parenquimatosas, las endoteliales, tanto sinusoidales como vasculares, las células de Kupffer, las células epiteliales de la vía biliar y las células estrelladas hepáticas.
Su citoplasma se caracteriza por presentar múltiples y prominentes gotitas de grasa de 1 a 2 µm de diámetro. Estas gotitas de grasa representan el principal sitio de almacenamiento de vitamina A o retinol.
Más del 90% de la vitamina A hepática, que corresponde al 80% del total del organismo, se halla almacenado en las células estrelladas hepáticas, mientras que el resto se encuentra en las células parenquimatosas.
Prolongaciones citoplasmáticas
En las células estrelladas hepáticas, desde su pericarion nacen numerosas largas y finas prolongaciones citoplásmicas denominadas procesos o prolongaciones primarias, que corren a lo largo de los sinusoides.
De estas prolongaciones primarias surgen las prolongaciones secundarias, que entran en contacto directo con las células endoteliales. Observaciones recientes revelan la presencia de microespinas que nacen de los procesos citoplásmicos y que interactúan con las células parenquimatosas.
Estas microespinas delimitan un espacio entre las células parenquimatosas y las células estrelladas hepáticas donde se encuentran fibras colágenas y también fibras nerviosas. Estas observaciones pueden modificar el clásico concepto del espacio de Disse a otro definido como un espacio situado entre los hepatocitos, por un lado, y las células estrelladas hepáticas y el endotelio sinusoidal, por el otro.
Funciones normales de las células estrelladas hepáticas
En condiciones normales, las células estrelladas hepáticas cumplen varias funciones en el hígado, como almacenar vitamina A, controlar la comunicación intercelular por medio de la liberación de varios mediadores intercelulares y remodelar gran parte de la matriz extracelular presente en un hígado normal.
La remodelación de la matriz extracelular se realiza mediante la producción de sus componentes colágenos y no colágenos, la síntesis de las metaloproteinasas de la matriz extracelular y la síntesis de los inhibidores de las metaloproteinasas.
Las metaloproteinasas de la matriz extracelular son un grupo de enzimas capaces de catabolizar los componentes de la matriz extracelular. Los inhibidores tisulares de metaloproteinasas tienden a controlar la actividad catalítica de las metaloproteinasas a fin de mantener las sustancias de la matriz intersticial en una concentración estable.
Estas funciones tienen como propósito básico controlar la homeostasis tisular y mantener una especie de equilibrio fisiológico entre la síntesis y la degradación de los componentes de la matriz extracelular.
Células progenitoras hepáticas
Las células madre se han definido como células primitivas que se autorreplican, que son pluripotentes, es decir, producen células hijas con más de un destino, que pueden expandirse por todas partes y que pueden reconstituir un tejido o tejidos.
Las células madre determinadas son células pluripotentes que tienen restringido su potencial genético al de un número limitado de tipos celulares y tienen un potencial de crecimiento extenso. Las células madre determinadas dan origen a células hijas que pierden pluripotencia, restringiendo su potencial genético a un destino único, por ejemplo hepatocitos, y se denominan células progenitoras comprometidas.
En el hígado, las células progenitoras pueden diferenciarse hacia el linaje hepatocitario o hacia el linaje biliar. Esta capacidad adquiere especial importancia cuando la proliferación de los hepatocitos maduros o de los colangiocitos resulta insuficiente para reparar una lesión.
Origen embrionario del hígado
El hígado se desarrolla como resultado de la convergencia de un divertículo formado desde el intestino anterior caudal y el tabique transverso, parte del mesénquima esplácnico.
La formación de las células hepáticas empieza después de que el epitelio endodérmico interacciona con el mesodermo cardiogénico, probablemente por medio de factores de crecimiento de fibroblastos. Las células hepáticas especificadas entonces proliferan y penetran en el mesénquima del tabique transverso de una manera similar a un cordón, formando el primordio del hígado.
La interacción directa entre epitelio y mesénquima es crítica en estas fases tempranas del desarrollo del hígado y dicta qué células serán hepatocitos o colangiocitos y cuáles formarán endotelios fenestrados, respectivamente.
Las mutaciones en los genes específicos del mesénquima hlx y jumonji bloquean el desarrollo del hígado, ilustrando la importancia de las contribuciones de este tejido.
Maduración del tejido hepático
De manera temprana en su desarrollo, el hígado consiste en agrupaciones de hepatocitos primitivos unidos por un epitelio continuo que carece de una membrana basal y contiene abundantes células hemopoyéticas.
Cuando el endotelio se transforma para volverse un endotelio discontinuo y fenestrado, la vasculatura, especialmente la vasculatura portal, se desarrolla más con la producción de membranas basales. Los hepatocitos inmaduros proliferan rápidamente y se forman placas parenquimatosas.
La formación de estas placas probablemente responde a cambios en la cantidad y distribución de moléculas de organización tisular como C-CAM 105, Agpl 10, E-caderina y conexinas, coincidentes con la reubicación de la mayoría, pero no todas, de las células hemopoyéticas en la médula ósea.
La organización física madura se logra en el plazo de las primeras semanas después del nacimiento en roedores y, en seres humanos, durante los primeros años. La zonación metabólica se establece según programas algo diferentes para enzimas diferentes, pero se vuelve evidente en el periodo después del nacimiento.
Controversia sobre las células madre del hígado adulto
La presencia de células madre en el hígado normal adulto es el tema de una gran controversia en el campo de la biología de las células hepáticas. Algunos expertos acreditan que las células madre hepáticas existen solamente en tejido embrionario, que no existen células madre en hígados adultos y que todas las células del hígado maduras participan igualmente en los procesos regenerativos del hígado.
El modelo de Farber considera que todas las células parenquimatosas maduras son análogas fenotípicamente y que la heterogeneidad conocida del potencial de crecimiento y de la expresión génica en el hígado se debe solamente al microentorno.
Otros expertos acreditan que todas las células del hígado son células madre. Estos investigadores consideran que todas las células parenquimatosas son análogas, son sumamente plásticas y tienen una expresión génica dictada solamente por el microentorno.
En estados oncogénicos apropiados, las células parenquimatosas maduras se vuelven hipotéticamente células madre que pueden convertirse posteriormente en células tumorales. La diversidad de modelos refleja la complejidad de la regeneración hepática y la dificultad para separar la plasticidad de las células maduras de la actividad de poblaciones progenitoras específicas.
Regeneración hepática y reparación tisular
Después de la necrosis, el hígado puede regenerarse a sí mismo. Incluso la necrosis extensa podría recuperarse por completo, como puede ocurrir en la hepatitis viral aguda.
No obstante, las lesiones que se extienden a través de todo el lóbulo o las lesiones menos pronunciadas pero persistentes pueden ocasionar regeneración incompleta y fibrosis.
La capacidad de regeneración depende de la intensidad y la duración de la lesión, del estado funcional de las células maduras y de la conservación del microentorno que sostiene la organización del tejido hepático.
Investigaciones recientes sobre las células estrelladas y la función hepática
Una investigación internacional publicada en la revista Nature y liderada por la Universidad de Columbia de Nueva York, en la que han participado investigadores del Cima, de la Clínica Universidad de Navarra y del Hospital Clínic de Barcelona, ha concluido que las células estrelladas del hígado son esenciales para el buen funcionamiento de este órgano.
Hasta ahora, sólo se sabía que estaban implicadas en el desarrollo de la fibrosis hepática, una enfermedad que consiste en la acumulación progresiva de tejido cicatricial en este órgano como respuesta a una lesión o inflamación crónica.
Gracias a este estudio, se ha podido comprobar que las células estrelladas hepáticas producen una proteína llamada RSPO3 que contribuye a mantener una correcta organización espacial o zonal. La expresión de esta proteína en las células estrelladas decae en patologías hepáticas.
Los investigadores han trabajado durante la última década combinando técnicas de análisis en tejidos humanos y modelos animales, y también han recurrido a técnicas de ingeniería genética. En el laboratorio, los científicos han descubierto que la capacidad para regenerarse, desintoxicar el cuerpo y realizar otras funciones importantes del hígado se alteró profundamente al eliminar estas células en ratones.
Asimismo, han descubierto que, cuando estas células estrelladas se activan demasiado, algo que sucede si hay enfermedad, la proteína RSPO3 disminuye en las células. Este bajo nivel de la proteína predice un peor pronóstico en pacientes con enfermedad hepática asociada al alcohol, lo que sugiere que, en condiciones normales, las células estrelladas están implicadas en proteger al hígado.
La referencia bibliográfica comunicada para este trabajo es: Sugimoto, A. et al. (2025), “Hepatic stellate cells control liver zonation, size and functions via R-spondin 3”, Nature, 640, 752-779.
Activación de las células estrelladas y fibrogénesis hepática
La fibrosis hepática es un proceso dinámico que provoca la interrupción de las funciones hepáticas con disfunción del órgano. Generalmente, se produce como una respuesta a la lesión hepatocelular crónica provocada por el abuso de bebidas alcohólicas, infecciones crónicas, enfermedades biliares y afecciones congénitas metabólicas, entre otras.
La fibrosis hepática puede llegar a conducir a largo plazo al desarrollo de cirrosis y carcinoma hepatocelular. La fibrogénesis hepática se define como un complejo y dinámico proceso fisiopatológico caracterizado por el depósito de tejido fibroso en el hígado como consecuencia de un desequilibrio entre la producción y la degradación de los componentes de la matriz extracelular.
Este proceso aparece en respuesta a varias agresiones repetitivas o crónicas de intensidad suficiente para conducir a un proceso de cicatrización. Independientemente de la causa, existe una progresiva deposición de múltiples tipos de proteínas colágenas y no colágenas en el intersticio y en el espacio de Disse.
Características de la activación
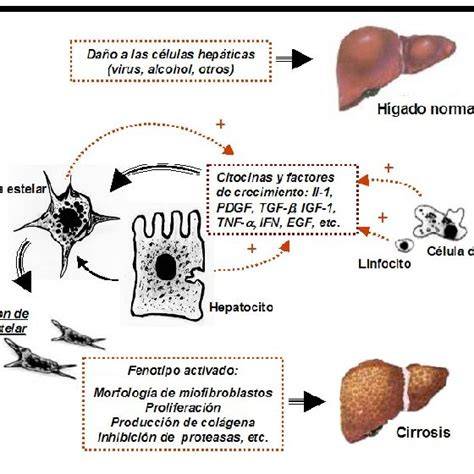
Tras la lesión crónica del tejido hepático resultante de cualquier etiología, tanto las células estrelladas hepáticas como las otras células productoras de la matriz extracelular presentes en el tracto portal sufren un proceso anormal que se denomina activación.
La activación de las células estrelladas hepáticas es un proceso patológico que se caracteriza por la pérdida de las típicas gotitas de grasa, el aumento del número y del tamaño celulares y la transdiferenciación fenotípica a células proliferativas, fibrogénicas y contráctiles muy similares a los miofibroblastos.
Tanto los estímulos patológicos como los mediadores intercelulares y los cambios de la matriz extracelular son factores de vital importancia para llevar a cabo dicha activación celular.
Inicio de la activación
El inicio del proceso de activación de las células estrelladas hepáticas se produce por el impacto de la lesión de las células parenquimatosas o de las células del tracto biliar sobre la homeostasis tisular.
También intervienen los efectos de los estímulos citocínicos provenientes tanto de células inflamatorias como de células vecinas, y las modificaciones en la composición de la matriz extracelular, que las células estrelladas perciben por medio de sus receptores, las integrinas que conectan componentes de la matriz extracelular al citoesqueleto.
Todas estas alteraciones provocan en las células estrelladas importantes cambios en la expresión genética que generan una serie de modificaciones fenotípicas y les permiten responder a los crecientes estímulos patológicos locales.
Estas modificaciones fenotípicas en las células estrelladas activadas se sostienen por medio de una compleja señalización intercelular autocrina y paracrina.
Mediadores de la activación
- Mediadores inductores de la proliferación o de la motilidad celular: el factor de crecimiento derivado de las plaquetas, el factor de crecimiento básico de los fibroblastos y el factor de crecimiento insulinoide 1.
- Mediadores fibrogénicos: el factor transformador del crecimiento tipo beta 1, o TGF-β1, y la interleucina 6.
- Mediadores inductores de la contracción: la endotelina-1, la trombina, la angiotensina II y la vasopresina.
- Mediadores con actividad antiinflamatoria y antifibrótica: la interleucina 10 y el interferón gamma.
Estrés oxidativo
También es importante recordar el papel del estrés oxidativo en la activación de las células estrelladas hepáticas. Varios estudios experimentales señalan que las especies reactivas de oxígeno, como el peróxido de hidrógeno y los radicales libres, están implicadas en el desarrollo y la progresión de diversas enfermedades y de la lesión hepática crónica.
Estos productos metabólicos son tóxicos para el organismo y conducen a alteraciones del metabolismo celular, inhibición del crecimiento y finalmente muerte celular. Por fortuna, el organismo dispone de un grupo de sistemas de enzimas antioxidantes para contrarrestar los efectos tóxicos de las especies reactivas de oxígeno.
Etapas de la activación
El proceso de activación de las células estrelladas puede dividirse en dos etapas: iniciación y perpetuación.
La iniciación, también llamada etapa preinflamatoria, corresponde a los primeros acontecimientos del proceso y comprende los cambios rápidos de la expresión genética y del fenotipo que permiten a las células estrelladas responder a los estímulos locales y citocínicos.
La iniciación es el resultado de los estímulos paracrinos provenientes de las células vecinas y de los cambios tempranos de la composición de la matriz extracelular.
La perpetuación corresponde a los acontecimientos celulares que amplifican el fenotipo activado por medio de los efectos crecientes de diversas citocinas. Comprende la proliferación, la fibrogénesis, la contractilidad, la liberación de citocinas, la quimiotaxis, la motilidad celular, la pérdida de retinoides y la regulación de la matriz extracelular.
Esta etapa es el resultado de estímulos autocrinos y paracrinos, así como de la remodelación acelerada de la matriz extracelular.
Producción de matriz extracelular
Normalmente, la matriz extracelular del hígado consta de variadas sustancias colágenas y no colágenas cuya composición y concentración son responsabilidad de las células estrelladas hepáticas.
Estos componentes intercelulares son elementos esenciales para mantener la morfología y las funciones de las células del hígado, y sus alteraciones cualitativas o cuantitativas determinan modificaciones patológicas tanto desde el punto de vista morfológico como funcional.
En la lesión hepatocelular, las células estrelladas sufren un proceso de transdiferenciación fenotípica a miofibroblastos. Estos nuevos miofibroblastos constituyen una nueva fuente de múltiples tipos de proteínas colágenas y no colágenas de la matriz extracelular.
- Colágeno tipo I.
- Colágeno tipo III.
- Colágeno tipo IV.
- Laminina.
- Elastina.
- Fibronectina.
- Condroitinsulfato.
- Dermatansulfato.
- Heparansulfato.
En las primeras etapas de la lesión hepatocelular ya existe una creciente deposición de colágeno tipo III, tipo IV y fibronectina en el espacio de Disse. No obstante, en el hígado cirrótico, la cantidad de matriz extracelular depositada por los miofibroblastos puede ser más de seis veces la del hígado normal.
El papel del TGF-β en la fibrosis
Muchas sustancias y agentes fibrogénicos provenientes de las células inflamatorias y de las células hepáticas, entre ellas las células estrelladas hepáticas, se liberan durante el proceso inflamatorio, donde actúan de forma paracrina y autocrina sobre las células estrelladas y contribuyen a mediar y mantener el proceso fibrogénico.
Uno de los más importantes y potentes mediadores profibróticos en la lesión hepática es el factor transformador del crecimiento beta, o TGF-β.
El TGF-β es un factor de crecimiento ampliamente distribuido en el organismo y regula no sólo la deposición de la matriz extracelular como parte de la respuesta normal a la lesión tisular, sino que también es un mediador de gran importancia en la fibrosis patológica.
El TGF-β pertenece a una familia de péptidos multifuncionales llamada superfamilia del TGF-β, que integra más de 30 citocinas, entre las cuales se incluyen cinco isoformas del TGF-β, tres de las cuales se identificaron en los mamíferos: TGF-β1, TGF-β2 y TGF-β3.
Estas moléculas ejercen sus acciones a través de una familia de receptores membranosos de tipo I y II con actividad proteinquinasa intrínseca. En el hígado están presentes las tres isoformas, aunque parece que el TGF-β1 es el de mayor importancia y tiene un papel muy destacado en la fibrogénesis hepática.
El TGF-β es sintetizado principalmente por las células estrelladas hepáticas, donde produce de forma autocrina sus principales efectos fibrogénicos.
Los estudios in vitro e in vivo demuestran que el TGF-β provoca en las células estrelladas activadas un aumento de la síntesis de las fibras colágenas, que se depositan progresivamente en el espacio intercelular y en el espacio de Disse, alterando la función y la homeostasis de las células hepáticas.
Asimismo, estimula la síntesis de los componentes de la membrana basal, lo que conduce a la capilarización de los sinusoides. En ratas transgénicas, la sobreexpresión del TGF-β1 puede inducir la fibrosis, mientras que la fibrosis experimental puede inhibirse con anticuerpos neutralizantes.
Está ampliamente aceptado que la persistente estimulación autocrina de las células estrelladas por el TGF-β es un mecanismo clave en el desarrollo de la fibrogénesis hepática. Sin embargo, este concepto aún sigue en discusión.
Degradación de la matriz extracelular
La progresión de la fibrosis hepática se asocia no sólo a la excesiva producción de la matriz extracelular, sino además a una importante inhibición anormal de su degradación.
Las metaloproteinasas de la matriz extracelular son un grupo de enzimas que se encargan de catalizar los componentes de la matriz extracelular. Los inhibidores tisulares de metaloproteinasas pueden bloquear las actividades catalíticas de estas enzimas a fin de mantener en condiciones normales un equilibrio fisiológico entre la síntesis y la degradación de los componentes de la matriz extracelular.
Dentro de las metaloproteinasas cabe mencionar las colagenasas, que degradan los colágenos intersticiales de tipos I, II y III; las gelatinasas, que se encargan de catalizar componentes de la membrana basal; y las estromalisinas, que actúan sobre una amplia serie de sustancias como los proteoglucanos y la laminina.
Todas esas metaloproteinasas son sintetizadas por diferentes tipos de células hepáticas, mientras que el TIMP-1 y el TIMP-2, que son los dos inhibidores de las metaloproteinasas más importantes y estudiados hasta el momento, se expresan únicamente en las células estrelladas hepáticas.
Estas moléculas en conjunto son importantes no sólo en la fisiología de la remodelación y reparación de la matriz extracelular, sino también en el desarrollo del proceso fibrogénico.
Enfermedades que alteran las células de la línea hepática
Los trastornos hepáticos pueden producirse como consecuencia de diversas noxas, como infecciones, medicamentos, sustancias ilícitas, toxinas, isquemia y trastornos autoinmunitarios. En ocasiones, la disfunción hepática puede ocurrir en el posoperatorio.
La mayor parte de las hepatopatías causan cierto grado de lesión y necrosis hepatocelular, que da lugar a diversas alteraciones en las pruebas de laboratorio y, a veces, síntomas.
| Enfermedad | Estructura o función afectada de forma preferente |
|---|---|
| Hepatitis viral aguda | Daño a los hepatocitos o lesión hepatocelular |
| Colangitis biliar primaria | Deterioro de la secreción biliar y colestasis |
| Cirrosis | Fibrosis hepática e hipertensión venosa portal resultante |
Los síntomas pueden ser el resultado de la hepatopatía propiamente dicha, como la ictericia secundaria a hepatitis aguda, o de sus complicaciones, como la hemorragia digestiva aguda causada por cirrosis e hipertensión portal.
Algunas enfermedades afectan múltiples estructuras hepáticas y producen una combinación de patrones de síntomas, signos y alteraciones de las pruebas de laboratorio. La hepatopatía alcohólica grave es un ejemplo de enfermedad que puede afectar varios compartimentos del hígado.
La fibrosis hepática provoca una acumulación progresiva de tejido cicatricial en el hígado y puede conducir a la cirrosis. Aunque este órgano es capaz de repararse si sufre daños leves, si la lesión es persistente puede afectar gravemente a su estructura y su función.
Esto suele suceder si se mantiene un consumo elevado de alcohol, se padecen enfermedades metabólicas hepáticas asociadas a la obesidad o la diabetes tipo 2, o persisten infecciones virales hepáticas sin diagnosticar.
Aplicaciones experimentales de las células progenitoras hepáticas
La identificación de células progenitoras hepáticas y el estudio de sus marcadores permiten analizar poblaciones celulares capaces de diferenciarse hacia hepatocitos, células biliares y otros linajes del hígado.
Los estudios sobre células progenitoras del hígado humanas se han orientado a proporcionar composiciones derivadas de tejido hepático humano que comprendan una población enriquecida de estas células.
En particular, se han estudiado marcadores y propiedades utilizadas para identificar células progenitoras del hígado humanas, métodos de purificación, enfoques que permiten distinguir subpoblaciones hepáticas de hemopoyéticas y pruebas que demuestran que las células progenitoras hepáticas existen en hígados desde hígados humanos fetales hasta adultos.
Estas investigaciones constituyen una base experimental para las terapias celulares y génicas y para la creación de órganos bioartificiales.
Cultivo de células de la línea hepática
El medio mínimo esencial de Eagle, o EMEM, es uno de los medios basales más utilizados para el cultivo de una amplia gama de células de mamíferos, en particular de líneas celulares adherentes.
Esta fórmula clásica contiene los aminoácidos esenciales, las vitaminas y las sales inorgánicas necesarias para favorecer el crecimiento tanto de células primarias como de líneas celulares establecidas en condiciones de cultivo estándar.
La formulación líquida está suplementada con la solución salina equilibrada de Earle, 2 mM de L-glutamina, D-glucosa a 1,0 g/L y 2,2 g/L de bicarbonato sódico, lo que la hace adecuada para su uso en una atmósfera de incubadora con control de dióxido de carbono, normalmente al 5%.
El rojo de fenol incluido actúa como indicador de pH, lo que permite un control visual del estado del medio durante el cultivo celular.
| Componente o característica | Descripción |
|---|---|
| Base | MEM de Eagle con solución salina equilibrada de Earle |
| L-glutamina | 2 mM |
| D-glucosa | 1,0 g/L |
| Bicarbonato sódico | 2,2 g/L |
| Indicador de pH | Rojo de fenol |
| HEPES | Sin HEPES |
| Piruvato sódico | Sin piruvato sódico |
| pH | 7,0-7,6 |
El EMEM permite el cultivo de una amplia variedad de líneas celulares de mamíferos, entre ellas HeLa, HEK 293, Vero, MRC-5, L-929, BHK-21 y muchas células primarias.
Entre las aplicaciones habituales se incluyen el mantenimiento rutinario y la expansión de líneas celulares adherentes, los flujos de trabajo de propagación de virus y producción de vacunas, las aplicaciones de citotoxicidad y bioensayos, los estudios de transfección y expresión de proteínas y la investigación básica en biología celular y biología molecular.
Para un crecimiento celular óptimo, el EMEM se suele complementar con un 5-10% de suero fetal bovino y, dependiendo de la línea celular, con aminoácidos no esenciales y antibióticos como penicilina y estreptomicina.
El medio debe almacenarse sin abrir a una temperatura de entre +2 °C y +8 °C, protegido de la luz. Una vez abierto, debe utilizarse en condiciones asépticas.
La L-glutamina en solución está sujeta a una degradación gradual; se recomienda utilizar el medio en un plazo de cuatro semanas tras su apertura para obtener un rendimiento óptimo, o añadir L-glutamina fresca antes de su uso si se almacena durante períodos más largos.
El medio debe dejarse calentar hasta alcanzar los 37 °C antes de añadirlo a las células.
2. Métodos para el aislamiento y caracterización de células no-parenquimales
tags: #celulas #de #la #linea #hep
Publicaciones populares:
- Rutas en Alicante en bicicleta
- La importancia de los filtros de aire comprimido en la seguridad alimentaria
- Cómo elegir el filtro adecuado para tu enfriador de agua
- Cómo usar la Mascarilla de Barro Volcánico
- Cómo seleccionar un alguicida para plantas acuáticas en tu acuario